Search
免疫球蛋白的结构与分类
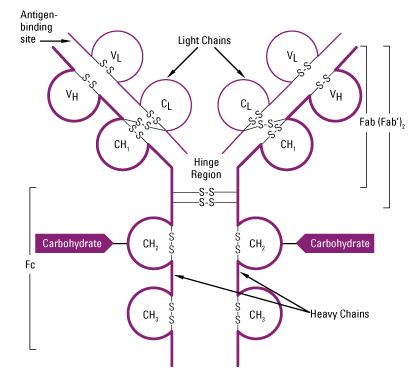
免疫球蛋白的概述性结构
页面内容
免疫球蛋白的结构
抗体(或免疫球蛋白)分子为糖蛋白,由一个或多个单元组成。每个单元含有四条多肽链:两条相同的重链(H)和两条相同的轻链(L)。多肽链的氨基端在氨基酸组成上具有较大变异,称为可变区(V),以区别于相对恒定的恒定区(C)。每条轻链含有一个可变域 VL 和一个恒定域 CL;每条重链含有一个可变域 VH 以及三个恒定域 CH1、CH2 与 CH3。每条重链的氨基酸数和分子量约为轻链的两倍(重链约50,000 Da;轻链约25,000 Da),因此一个免疫球蛋白单体的总分子量约为150,000 Da。

免疫球蛋白结构注释图。
重链与轻链通过非共价相互作用和链间二硫键的共价连接结合,形成左右对称的二聚结构。重链与轻链的可变区构成免疫球蛋白(Ig)分子的抗原结合位点。每个 Ig 单体包含两个抗原结合位点,因此称为双价分子。
铰链区位于重链的第一个与第二个恒定区之间,由二硫键连接并具有柔性。该柔性铰链(存在于 IgG、IgA 和 IgD 中,但不见于 IgM 或 IgE)允许两个抗原结合位点之间的相对距离发生变化。
了解更多:抗体标记与固定化位点
免疫球蛋白的类别
主要的五类免疫球蛋白为 IgG、IgM、IgA、IgD 和 IgE。它们根据分子中所含重链的类型加以区分:IgG 的重链称为 γ(gamma)链;IgM 的为 μ(mu)链;IgA 的为 α(alpha)链;IgE 的为 ε(epsilon)链;IgD 的为 δ(delta)链。
重链多肽的差异使这些免疫球蛋白在不同类型的免疫反应以及免疫反应的不同阶段发挥不同功能。这些差异主要由位于 Fc 片段的多肽序列决定。尽管存在五种不同类型的重链,但轻链主要只有两种:κ(kappa)和 λ(lambda)。
抗体各类别在价态(价数)上不同,这是由于不同数量的类 Y 结构单元(单体)聚合形成完整蛋白。例如,在人类中,功能性 IgM 抗体由五个 Y 形单元组成(五聚体),总共含有十条轻链、十条重链以及十个抗原结合位点。
IgG 类
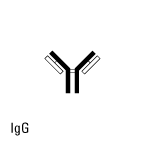
IgG 的特性:
- 分子量:150,000 Da
- 重链类型 (MW):γ(53,000 Da)
- 血清浓度:10 至 16 mg/mL
- 占总免疫球蛋白的百分比:75%
- 糖基化(按重量计):3%
- 分布:血管内及血管外
- 功能:继发(免疫)反应
- 了解更多:IgG
IgM 类
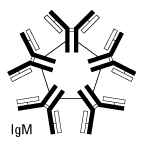
IgM 的特性:
- 分子量:900,000 Da
- 重链类型 (MW):μ(65,000 Da)
- 血清浓度:0.5 至 2 mg/mL
- 占总免疫球蛋白的百分比:10%
- 糖基化(按重量计):12%
- 分布:主要位于血管内
- 功能:初级免疫反应
- 了解更多:IgM
IgA 类
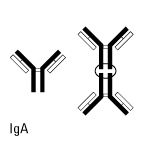
IgA 的特性:
- 分子量:320,000 Da(分泌型)
- 重链类型 (MW):α(55,000 Da)
- 血清浓度:1 至 4 mg/mL
- 占总免疫球蛋白的百分比:15%
- 糖基化(按重量计):10%
- 分布:血管内及分泌物中
- 功能:保护黏膜
- 了解更多:IgA
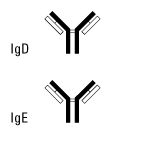
IgD 与 IgE 类
探索:同型对照抗体
免疫球蛋白的亚类
除主要免疫球蛋白类别外,每一动物物种中还存在若干 Ig 亚类。抗体的亚类基于该类重链的细微差异来分类。人类有四种 IgG 亚类:IgG1、IgG2、IgG3 和 IgG4(按血清浓度从高到低编号)。
不同亚类之间的差异小于不同类别之间的差异。例如,IgG1 与 IgG2、IgG3、IgG4 的相关性比与 IgA、IgM、IgD 或 IgE 更高。因此,抗体结合蛋白(例如 Protein A 或 Protein G)以及大多数用于免疫检测方法的二抗通常会与多个亚类发生交叉反应,但通常不会与多个 Ig 类交叉反应。
探索:抗体纯化产品
多克隆与单克隆抗体
无论其类别或亚类如何,用作免疫测定试剂的抗体通常以两种基本形式产生和纯化:多克隆与单克隆。通常,对抗原的免疫应答是异质性的,会产生多种不同来源的 B 淋巴细胞(浆细胞的前体)细胞系,这些细胞系可产生针对同一抗原的抗体。所有这些细胞均源自共同的干细胞,但每个细胞系会发展出识别同一抗原上特定决定基(表位)的单一能力。由于这种异质性,应免疫的动物血清中将含有许多针对该抗原的特异性抗体克隆,可能属于数种不同的免疫球蛋白类别和亚类,通常占总免疫球蛋白的大约2%至5%。由于含有这种异质的抗原结合免疫球蛋白集合,从该类样品中纯化得到的抗体称为多克隆抗体。多克隆抗体通常直接从血清中纯化,作为标记的二抗在免疫测定中尤其有用。
由于单个 B 淋巴细胞只能产生并分泌单一特异性的抗体分子,因此 B 淋巴细胞的克隆会产生单克隆抗体。由 B 细胞克隆分泌的所有抗体均相同,因而提供了具有单一定义特异性的均一抗体来源。然而,虽可从免疫动物摘取的脾脏或淋巴结细胞悬液中分离出 B 淋巴细胞,但这些细胞寿命有限,不能直接培养以产生大量抗体。幸而通过杂交瘤(hybridoma)技术可克服该限制:将分离得来的 B 淋巴细胞与同种(通常为小鼠)的骨髓瘤细胞融合,产生既接近永生化又保留产抗能力的单克隆杂交细胞系。此类杂交瘤可冷冻保存,并在需要时培养以产生特定的单克隆抗体。单克隆抗体在需要单一表位特异性并保证多年恒定供应的应用中,作为一抗特别有用。杂交瘤克隆既可在细胞培养中扩增,也可通过腹水收集抗体。
相关内容
参考文献
- Alberts, B., et al. (1983). Molecular Biology of the Cell. Garland Publishing, Inc., New York, NY.
- Harlow, E. and Lane, D. (1988). Antibodies: A Laboratory Manual. Cold Spring Harbor Laboratory, Cold Spring Harbor, NY.
- Sites, D.P., et al. (1976). Basic & Clinical Immunology. Lange Medical Publication, Los Altos, CA.